
探究 Brainbow 與 Cre-lox 重組系統:深入剖析多色標記與基因調控機制
解鎖神經迴路與細胞命運的基因工程利器
Brainbow技術與Cre-lox重組系統是現代生物學領域中極為強大的工具,它們共同為研究人員提供了前所未有的能力,以精確地標記、追蹤和操縱活體生物中的細胞和基因。Cre-lox系統的基礎是Cre重組酶及其識別的loxP位點,這使得在DNA上進行定點刪除、插入、轉位和倒位成為可能。在此基礎上發展起來的Brainbow技術則利用Cre-lox系統,通過隨機組合表達多種螢光蛋白,為單個細胞賦予獨特的顏色,從而實現複雜神經網絡的「彩色繪圖」。
核心洞察與關鍵要點
- Cre-lox系統的精準操控: Cre重組酶識別DNA上的loxP位點,能夠執行精確的DNA重組(刪除、倒位、插入、轉位),實現基因表達的時空特異性控制。
- Brainbow的多色細胞標記: Brainbow技術結合Cre-lox系統,通過在單個細胞中隨機表達多種螢光蛋白(XFPs),生成數百種獨特顏色,極大地促進了複雜生物結構如神經元連接的可視化研究。
- DIO與DO開關的基因調控: DIO(Double-floxed Inverted Orientation)和DO(Double-floxed Orientation)向量是Cre-lox系統的進階應用,分別實現了Cre存在時的基因「開啟」(Cre-On)或「關閉」(Cre-Off)調控,提供了靈活的基因功能研究手段。
Cre-lox 重組系統:基因工程的基石
Cre 重組酶與 loxP 位點的相互作用
Cre-lox重組系統是一種源自P1噬菌體的位點特異性重組酶技術,它由Cre重組酶和其識別的loxP位點組成。loxP位點是34個鹼基對的DNA序列,包含兩個13個鹼基對的回文識別區和一個8個鹼基對的非回文間隔區。這個間隔區賦予了loxP位點方向性,並且只有相同間隔區的loxP位點才能被Cre重組酶識別並發生重組。
Cre重組酶的工作原理是:兩個Cre蛋白分子首先識別並結合到兩個loxP位點上,形成二聚體。隨後,這兩個Cre-loxP二聚體結合形成一個四聚體,將兩個loxP位點拉近。Cre重組酶隨後在兩個loxP位點之間剪切DNA,並由DNA連接酶重新連接兩條鏈。根據loxP位點的相對方向,Cre-lox系統可以導致DNA片段的刪除、倒位、插入或轉位。
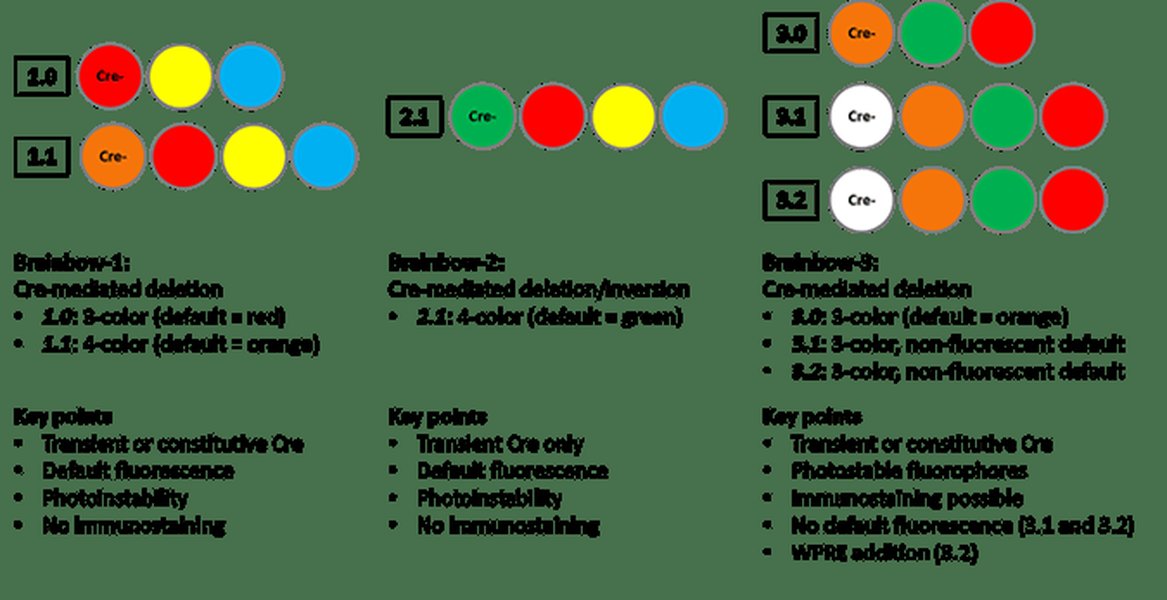
圖示:Brainbow多色標記系統的概覽,展示了其如何利用Cre-lox重組實現多樣化的螢光標記。
Cre-lox 重組的不同結果
- 刪除 (Excision): 當兩個loxP位點方向相同並側翼包圍一個DNA片段時,Cre重組酶會將該片段及其中的一個loxP位點切除,導致DNA片段的永久性刪除。
- 倒位 (Inversion): 當兩個loxP位點方向相反並側翼包圍一個DNA片段時,Cre重組酶會倒轉該DNA片段的方向。這是一個可逆的過程,因為倒位後loxP位點仍然方向相反,Cre重組酶可以再次作用使其恢復原狀。
- 轉位 (Translocation): 當兩個loxP位點位於不同染色體或DNA分子的不同位置,且方向相同時,Cre重組酶可以介導這些位點之間的交換,導致DNA片段的轉位。
- 插入 (Insertion): 如果一個環狀DNA分子帶有一個loxP位點,並且宿主基因組中也有一個loxP位點,Cre重組酶可以將環狀DNA分子插入到宿主基因組中。
Cre-lox系統的關鍵優勢在於其能夠實現基因表達的時空特異性控制。通過將Cre重組酶的表達置於特定細胞類型特異性啟動子的控制之下,研究人員可以在特定的細胞群體中,或在特定的發育階段開啟或關閉基因表達。這對於研究基因功能、疾病模型以及開發基因治療策略至關重要。
Brainbow 技術:點亮神經迴路
從灰階到彩虹:Brainbow 的演進與機制
Brainbow技術於2007年由Joshua Sanes和Jeff Lichtman開發,它利用Cre-lox重組系統,在單個細胞中隨機且組合式地表達數種光譜上不同的螢光蛋白(XFPs),從而為細胞(特別是神經元)生成數百種獨特的顏色。這些獨特的顏色作為細胞識別標籤,極大地促進了複雜神經網絡的繪製和單個細胞行為的追蹤。
Brainbow 1.0 的機制
Brainbow 1.0 版本包含了三種螢光蛋白:RFP(紅色)、YFP(黃色)和M-CFP(膜錨定青色螢光蛋白)。這些螢光蛋白串聯排列,並被不同變體的loxP位點(loxN、lox2272、loxP)側翼包圍,且方向相同。在沒有Cre重組酶的情況下,第一個螢光蛋白(RFP)會默認表達。當Cre重組酶存在時,它會在這些不相容的loxP位點對之間隨機介導刪除事件。由於Cre只能在相同類型的loxP位點之間進行重組,因此會發生相互排斥的刪除事件。每次重組事件會移除一個loxP位點,阻止進一步的重組。這種隨機刪除導致每個細胞最終表達三種螢光蛋白中的一種,加上細胞中可能存在的數個轉基因拷貝的隨機組合,產生了豐富的顏色。
以下是Brainbow 1.0的可能結果:
- 無 Cre 重組: 僅表達最靠近啟動子的螢光蛋白(例如RFP)。
- Cre 重組: 根據隨機發生的刪除事件,表達YFP或M-CFP。由於轉基因拷貝的隨機多重整合,一個細胞中可以表達多種螢光蛋白的組合,產生多種顏色。
Brainbow 2.0 的機制
與Brainbow 1.0的刪除機制不同,Brainbow 2.0 採用了DNA倒位策略。在Brainbow 2.0中,兩個或多個XFP基因以頭對頭(反向)排列,並被一對反向排列的loxP位點側翼包圍。當Cre重組酶存在時,它會介導這些基因片段的隨機倒位。這種倒位事件會將一個原本不處於正確表達方向的螢光蛋白翻轉到正確的表達方向,從而使其表達。Brainbow 2.0 因此可以作為一個開關,在兩種預設的螢光蛋白之間進行切換(例如,在默認的RFP和CFP之間切換),增加了顏色表達的多樣性。
以下是Brainbow 2.0的可能結果:
- 無 Cre 重組: 默認表達其中一個螢光蛋白(例如RFP)。
- Cre 重組: 發生倒位,導致另一個螢光蛋白(例如CFP)表達。
Brainbow 3.0 及其後續改進
Brainbow 1.0和2.0存在一些局限性,例如螢光強度較低和某些顏色(默認表達的螢光蛋白)過度表達。為了解決這些問題,研究人員於2013年開發了Brainbow 3.0及其後續版本(3.1、3.2)。
- Brainbow 3.0: 保留了Brainbow 1.0的loxP格式,但替換了螢光基團,使用了光穩定性更高的mOrange2、EGFP和mKate2。mOrange2是默認表達的螢光蛋白。3.0版本還引入了瞬時Cre重組的必要性,以防止結構的持續倒位。
- Brainbow 3.1 和 3.2: 這些版本的一個顯著改進是它們在沒有Cre的情況下不表達任何螢光蛋白(沒有「默認」狀態),這解決了早期版本中某些顏色過度表達的問題,提高了色彩的平衡性。此外,Brainbow 3.2還加入了木本黃熱病病毒轉錄後調控元件(WPRE),以增強螢光蛋白的表達水平。這些版本還使用了法尼基化螢光蛋白衍生物,使其更均勻地運輸到神經元膜,從而更好地標記纖細的軸突和樹突。
總體而言,Brainbow技術通過其隨機且組合式的螢光蛋白表達,為神經科學家提供了一種「繪製」複雜神經迴路圖的強大工具,極大地推動了我們對大腦結構和功能的理解。
雷達圖:比較不同Brainbow版本和DIO/DO系統在多個關鍵性能指標上的表現。這些指標包括隨機顏色生成能力、基因調控靈活性、螢光信號強度、細胞膜定位效果、預設表達抑制以及技術複雜度。該圖清晰地展示了Brainbow技術的演進,特別是3.0版本在螢光特性上的顯著提升,以及DIO/DO系統在精確基因開關方面的優勢。
DIO 與 DO 開關:精確的基因表達控制
Cre-lox 系統在基因開關中的應用
DIO(Double-floxed Inverted Orientation)和DO(Double-floxed Orientation)是Cre-lox重組系統中兩種重要的基因開關策略,它們允許研究人員在Cre重組酶存在或不存在的情況下精確地控制特定基因的表達。
DIO(Cre-On)系統
DIO系統,也稱為Cre-ON、Cre-Switch、FLEx-Cre或FLEx-ON,其核心是將目標基因(Gene of Interest, GOI)克隆成倒置方向(例如3'->5'),並被兩對不同且不相容的loxP位點(例如loxP和lox2272)側翼包圍。在沒有Cre重組酶的情況下,由於基因是倒置的,因此不會表達。
當Cre重組酶存在時,它會介導兩對loxP位點之間的重組,將倒置的GOI翻轉到正確的表達方向(5'->3')。一旦基因被翻轉到正確方向,它就可以被轉錄和翻譯,從而開啟基因表達。因此,DIO向量是「Cre-On」的,它僅在Cre存在時才激活基因表達。
可能結果:
- 無 Cre 重組酶: 目標基因(GOI)處於倒置狀態,不表達。
- Cre 重組酶存在: Cre重組酶介導GOI的倒位,使其處於正確方向,從而表達GOI。
DO(Cre-Off)系統
DO系統與DIO系統相反,它被稱為「Cre-Off」。在DO向量中,目標基因最初以正確的表達方向(5'->3')存在,並被兩對方向相同但可能不相容的loxP位點側翼包圍。在沒有Cre重組酶的情況下,目標基因正常表達。
當Cre重組酶存在時,它會介導loxP位點之間的重組,將目標基因從正確方向倒轉為倒置方向。一旦基因被倒置,其表達就會被關閉。因此,DO向量在Cre存在時會關閉基因表達。
可能結果:
- 無 Cre 重組酶: 目標基因(GOI)處於正確方向,正常表達。
- Cre 重組酶存在: Cre重組酶介導GOI的倒位,使其處於倒置方向,從而關閉GOI的表達。
DIO和DO系統在基因功能研究中非常有用,特別是在需要精確控制基因表達的時空特異性時,例如在特定組織中敲除基因或在特定發育階段激活基因。它們也被廣泛應用於神經科學中,用於控制光遺傳學探針(如ChR2)或螢光蛋白的表達。
影片:這段影片深入解釋了FLEx(Flip Excision)向量如何利用Cre-lox系統來控制基因表達,對於理解DIO和DO開關的運作機制非常有幫助。FLEx向量的核心概念是通過基因倒位來開啟或關閉基因表達,提供了精確的時空控制能力。
Brainbow、DIO 和 DO 系統的綜合比較
不同應用場景下的選擇與考量
下表總結了Brainbow的不同版本以及DIO和DO系統在Cre重組酶存在與否時的運作機制和主要應用。
| 系統名稱 | 基本機制 | Cre 存在時的結果 | Cre 不存在時的結果 | 主要應用 |
|---|---|---|---|---|
| Brainbow 1.0/1.1 | Cre 介導的基因刪除(Excison) | 在多個串聯螢光蛋白中隨機刪除,導致表達剩餘的XFP,產生組合顏色(依賴於轉基因拷貝數)。 | 默認表達位於最前方的XFP。 | 細胞譜系追蹤,神經元連接可視化。 |
| Brainbow 2.0 | Cre 介導的基因倒位(Inversion) | 倒轉頭對頭排列的XFP,從而激活其中一個XFP的表達。 | 默認表達其中一個XFP。 | 細胞譜系追蹤,神經元連接可視化,但顏色組合較少。 |
| Brainbow 3.0/3.1/3.2 | Cre 介導的基因刪除或倒位,使用改良的XFP | 隨機組合表達改良的XFP,產生明亮且穩定的多種顏色(3.1/3.2無默認表達)。 | 3.0有默認表達(mOrange2),3.1/3.2無默認表達。 | 高分辨率神經元形態學研究,軸突/樹突示蹤。 |
| DIO(Cre-On) | Cre 介導的基因倒位,將倒置的GOI翻轉為正確方向 | 目標基因(GOI)由「關閉」狀態變為「開啟」狀態,開始表達。 | 目標基因(GOI)處於倒置狀態,不表達。 | 條件性基因激活,特定細胞類型基因表達。 |
| DO(Cre-Off) | Cre 介導的基因倒位,將正確方向的GOI翻轉為倒置方向 | 目標基因(GOI)由「開啟」狀態變為「關閉」狀態,停止表達。 | 目標基因(GOI)處於正確方向,持續表達。 | 條件性基因敲除或抑制,特定細胞類型基因失活。 |
這些系統的選擇取決於具體的研究目標。如果目標是同時可視化大量相鄰的細胞以繪製複雜的連接圖,Brainbow系列(尤其是3.x版本)是理想的選擇。如果需要精確地在特定細胞群中開啟或關閉特定基因的表達,DIO或DO系統則提供了強大的工具。這些Cre-lox基於的技術共同構成了現代分子生物學和神經科學研究中不可或缺的「基因畫筆」。
常見問題
Cre-lox重組系統的「位點特異性」指的是什麼?
Brainbow技術如何產生多種顏色,而不僅僅是三到四種螢光蛋白的顏色?
DIO和DO系統中的「雙側翼(Double-floxed)」是什麼意思?
為什麼Brainbow 3.0/3.1/3.2 比早期版本更受歡迎?
Cre-lox系統除了在基因工程中用於敲除和表達基因,還有哪些應用?
- 細胞譜系追蹤(Cell Lineage Tracing): 通過標記祖細胞,追蹤其後代細胞的發育和分化。
- 神經迴路繪製(Neural Circuit Mapping): 如Brainbow技術,用於可視化複雜的神經連接。
- 染色體重排(Chromosomal Rearrangements): 介導染色體的轉位或倒位以研究其生物學效應。
- 疾病模型構建: 在特定組織或時間點誘導基因突變,以建立精確的疾病動物模型。
- 幹細胞研究: 調控幹細胞分化和多能性相關基因的表達。
- 光遺傳學和化學遺傳學: 控制光敏離子通道或化學誘導基因的表達。
結論
Cre-lox重組系統及其衍生的Brainbow、DIO和DO系統是現代分子生物學和神經科學領域的基石工具。Cre重組酶能夠精確地介導DNA重組,為研究人員提供了在活體生物中精確控制基因表達和細胞行為的強大能力。Brainbow技術利用這種精準性,將複雜的生物結構(特別是神經元)「繪製」成色彩斑斕的圖景,極大地促進了對神經迴路連接和功能的理解。而DIO和DO開關則進一步拓展了Cre-lox的應用,實現了基因表達的條件性「開啟」或「關閉」,為基因功能研究、疾病建模和潛在的基因治療提供了靈活且精確的手段。隨著這些技術的不斷演進和完善,它們將繼續在解鎖生命奧秘的過程中發揮關鍵作用,為我們帶來更多突破性的發現。
推薦閱讀
- Cre-lox重組系統在植物遺傳學中的應用有哪些獨特之處?
- 光遺傳學如何結合Cre-lox系統來操縱特定神經迴路?
- 除了1.0, 2.0, 3.0,還有哪些進階的Brainbow變體及其成像優勢?
- 基於Cre-lox的基因治療面臨哪些挑戰及可能的解決方案?
參考搜索結果
 spikesandbursts.wordpress.com