
Desxifrant el Rotavirus: Una Verificació Detallada de la seva Estructura i Replicació
Explorant la complexa arquitectura i el cicle vital d'aquest important virus gastrointestinal.
Hola! Analitzem en profunditat la descripció que has proporcionat sobre el Rotavirus per verificar-ne l'exactitud basant-nos en la informació científica actualitzada, tal com es reflecteix a les fonts consultades. L'objectiu és oferir una resposta completa i precisa en català.
Punts Clau sobre el Rotavirus
- Estructura de Triple Càpsida: El virió posseeix una complexa estructura proteica de tres capes amb simetries icosaèdriques diferents (T=2 interna, T=13 intermèdia i externa).
- Genoma Segmentat: El seu material genètic consisteix en 11 segments únics d'ARN de doble cadena (dsRNA).
- Maquinària de Replicació Interna: Conté les seves pròpies enzims clau (VP1 i VP3) dins del nucli per a la transcripció i modificació de l'ARN viral.
Estructura Detallada del Virió del Rotavirus
El Rotavirus és un virus sense embolcall lipídic, caracteritzat per una estructura proteica altament organitzada i resistent, composta per tres capes concèntriques amb simetria icosaèdrica. Aquesta arquitectura única és fonamental per a la seva supervivència i el seu mecanisme d'infecció.
Les Tres Capes de la Càpsida
Capa Interna (Nucli o Core)
La capa més interna, sovint anomenada nucli (core), està formada principalment per 120 còpies de la proteïna VP2. Aquesta capa s'organitza seguint una simetria icosaèdrica amb un nombre de triangulació T=2. Aquesta estructura T=2 (o de vegades descrita com T=2*) tanca els 11 segments del genoma dsRNA i els enzims essencials per a la replicació primerenca, VP1 i VP3.
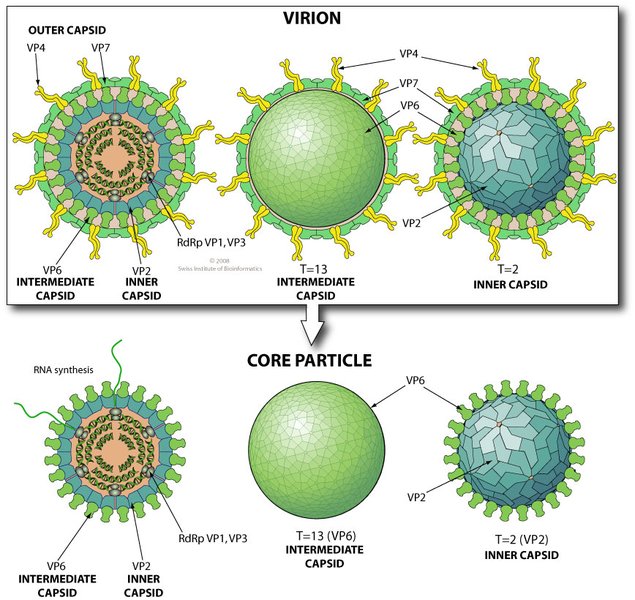
Il·lustració de les capes i proteïnes del Rotavirus. Font: ViralZone / Expasy
Capa Intermèdia
Envoltant el nucli de VP2 es troba la capa intermèdia, composta per 780 còpies de la proteïna VP6, organitzades en 260 trímers. Aquesta capa mostra una clara simetria icosaèdrica amb un nombre de triangulació T=13 (específicament, T=13l, indicant una disposició levogira). La capa de VP6 és molt estable i antigènicament important, formant la base sobre la qual s'assenta la capa més externa.
Capa Externa
La capa més externa, crucial per a l'entrada a la cèl·lula hoste, està formada per dues proteïnes: VP7 i VP4. La VP7 (una glicoproteïna) forma la superfície principal d'aquesta capa, seguint també la simetria T=13 establerta per la VP6 subjacent. Incrustades en aquesta capa de VP7 hi ha les espigues (spikes) formades per la proteïna VP4. La VP4 és essencial per a l'adhesió a les cèl·lules hoste (actuant com a lligand per a receptors cel·lulars com l'àcid siàlic o integrines) i per a la penetració. Per ser infecciosa, la VP4 sovint requereix un tall proteolític (per exemple, per la tripsina a l'intestí) en dues subunitats (VP8* i VP5*).
Per tant, la teva afirmació sobre la simetria T=2 per a la càpsida interna (VP2) i T=13 per a l'externa (VP6/VP7) és correcta. La presència de "receptors" a la superfície es refereix a les funcions d'adhesió de la proteïna VP4.
Genoma Viral: 11 Segments d'ARN Doble Cadena
Com has indicat correctament, el genoma del Rotavirus és singular. No és una única molècula, sinó que està format per 11 segments diferents d'ARN de doble cadena (dsRNA). Cada segment codifica generalment per una proteïna viral, tot i que alguns segments poden codificar-ne més d'una mitjançant mecanismes alternatius. En total, aquests segments codifiquen per 6 proteïnes estructurals (VP1, VP2, VP3, VP4, VP6, VP7) que formen part del virió, i 5 o 6 proteïnes no estructurals (NSP1-NSP6) que tenen funcions diverses durant el cicle de replicació dins la cèl·lula hoste. La mida total del genoma és d'aproximadament 18.550 parells de bases.
La Maquinària Interna: VP1 i VP3
Dins del nucli de VP2, associades estratègicament a prop dels vèrtexs de l'icosaedre (concretament als porus situats als eixos de simetria 5), es troben les proteïnes clau per iniciar el cicle replicatiu:
- VP1: És l'ARN polimerasa dependent d'ARN (RdRp) del virus. Aquesta enzim és responsable tant de la transcripció (síntesi d'ARNm a partir del genoma dsRNA) com de la replicació (síntesi de noves cadenes de dsRNA). Com has mencionat, també posseeix una activitat inherent semblant a una helicasa, necessària per desenrotllar localment el dsRNA durant la transcripció.
- VP3: És una enzim multifuncional que realitza l'encaputxament (capping) dels ARNm virals. Afegeix una estructura de "caputxa" de 7-metilguanosina (m7G) a l'extrem 5' dels ARNm mentre aquests són transcrits per VP1. Aquesta caputxa és essencial per a l'estabilitat dels ARNm, el seu transport fora del nucli viral, i el seu reconeixement pels ribosomes de la cèl·lula hoste per a la traducció.
La teva descripció de les funcions de VP1 (RdRp + helicasa) i VP3 (capping) i la seva localització als vèrtexs interns és precisa.
Visualització Conceptual: Estructura i Components Clau
El següent diagrama mental resumeix l'organització estructural i els components genòmics i enzimàtics clau del Rotavirus:
El Cicle de Replicació: Transcripció, Exportació i Síntesi
Entrada i Inici de la Transcripció
Un cop el Rotavirus entra a la cèl·lula hoste (sovint per endocitosi), perd la capa externa de VP4/VP7, formant una partícula de doble capa (DLP - Double-Layered Particle) que conté VP2, VP6, el genoma i els enzims VP1/VP3. Factors com la baixa concentració de calci a l'endosoma o al citosol activen la VP1. La teva idea sobre l'acidificació de l'endosoma que provoca l'obertura dels vèrtexs és parcialment correcta en el sentit que els canvis en l'entorn intracel·lular desencadenen l'activitat transcriptora. Tanmateix, la transcripció no requereix una "obertura" física massiva, sinó l'activació dels complexos VP1/VP3 situats als porus dels vèrtexs.
Dins d'aquestes DLP activades, la VP1 comença a transcriure els 11 segments de dsRNA. Utilitzant la cadena negativa (-) com a motlle, sintetitza 11 tipus d'ARNm de cadena positiva (+). Simultàniament, la VP3 afegeix la caputxa 5' a aquests ARNm naixents.
Exportació dels ARNm
Els ARNm (+) acabats de sintetitzar i encaputxats són extruïts des de l'interior de la DLP cap al citoplasma de la cèl·lula hoste a través de canals o porus situats als eixos de simetria de la capa de VP6. L'addició de la caputxa per VP3 és crucial per a aquest procés, no perquè "forci" la sortida mecànicament, sinó perquè completa la molècula d'ARNm i facilita el seu pas i posterior funció.
Replicació del Genoma en Viroplasmes
Aquí és on la teva descripció del procés de replicació necessita una clarificació important. El mecanisme acceptat és diferent del que suggereixes ("s'internalitza la cadena -, es torna a ajuntar amb la + per formar dsRNA").
Els ARNm (+) exportats al citoplasma tenen dues funcions principals:
- Traducció: Són traduïts pels ribosomes de la cèl·lula per produir totes les proteïnes virals (tant estructurals com no estructurals).
- Replicació (com a motlles): Serveixen de motlle per a la síntesi del nou genoma dsRNA.
Les proteïnes virals s'acumulen en estructures citoplasmàtiques denses anomenades viroplasmes, que actuen com a fàbriques d'assemblatge viral. Dins dels viroplasmes:
- Les proteïnes del nucli (VP1, VP2, VP3) s'associen amb els ARNm (+).
- Es seleccionen i s'empaqueten conjunts dels 11 ARNm (+) diferents dins de partícules de nucli (core) naixents formades per VP2.
- Un cop dins d'aquestes partícules naixents, la VP1 (RdRp) utilitza cada ARNm (+) com a motlle per sintetitzar la cadena complementària negativa (-).
- Això resulta en la formació dels 11 segments de dsRNA del genoma de la progènie, encapsidats de forma segura dins del nou nucli.
Posteriorment, aquests nuclis adquireixen la capa intermèdia de VP6 i, finalment, la capa externa de VP7/VP4 (aquesta última etapa sovint associada al reticle endoplasmàtic) per formar virions madurs que seran alliberats de la cèl·lula.
Complexitat Relativa de les Etapes del Cicle Viral
El cicle de vida del Rotavirus implica múltiples passos coordinats amb diferents nivells de complexitat estructural, enzimàtica i reguladora. El gràfic següent ofereix una representació visual estimada d'aquesta complexitat relativa en diferents etapes clau:
Aquest gràfic il·lustra com etapes com la transcripció primària, la formació del viroplasma, l'assemblatge selectiu de l'ARNm i la replicació del genoma dins les noves partícules representen punts d'alta complexitat enzimàtica i reguladora.
Resum de Proteïnes Clau i Funcions
La taula següent resumeix la localització i funció principal de les proteïnes estructurals més importants del Rotavirus discutides:
| Proteïna | Localització Principal | Funció Principal |
|---|---|---|
| VP1 | Nucli (associada a vèrtexs) | ARN Polimerasa dep. ARN (RdRp); Activitat Helicasa; Transcripció i Replicació |
| VP2 | Capa Interna (Nucli) | Component estructural principal del nucli; Simetria T=2 |
| VP3 | Nucli (associada a vèrtexs) | Enzim d'Encaputxament (Capping) de l'ARNm |
| VP4 | Capa Externa (Espigues) | Adhesió a la cèl·lula hoste; Penetració; Requereix tall proteolític per activació |
| VP6 | Capa Intermèdia | Component estructural principal de la capa intermèdia; Simetria T=13 |
| VP7 | Capa Externa (Superfície) | Glicoproteïna estructural principal de la capa externa; Simetria T=13 |
Perspectiva Visual: Simetria Viral
Comprendre la simetria icosaèdrica és fonamental per entendre l'estructura de molts virus, inclòs el Rotavirus. Els principis d'autoassemblatge i simetria permeten construir càpsides robustes i estables utilitzant un nombre limitat de proteïnes. El següent vídeo ofereix una explicació general sobre l'estructura i simetria dels virus.
Aquest vídeo de Stephen Harrison (Harvard/HHMI) il·lustra els conceptes de simetria en virus, ajudant a contextualitzar les simetries T=2 i T=13 mencionades per al Rotavirus, tot i que el vídeo pot cobrir exemples més amplis.
Preguntes Freqüents (FAQ)
Què significa exactament la simetria T=2 i T=13? +
En virologia estructural, el nombre de triangulació (T) descriu com s'organitzen les subunitats proteiques (capsòmers) per formar una càpsida icosaèdrica. Un icosaedre bàsic té 60 subunitats idèntiques (T=1). Valors de T més alts indiquen càpsides més grans i complexes.
- T=2: Indica una estructura formada per 120 subunitats (com la VP2 del Rotavirus). Aquesta simetria és menys comuna que la T=1 o T=3.
- T=13: Indica una estructura molt més gran, formada per 780 subunitats (13 x 60), com és el cas de la capa intermèdia (VP6) i externa (VP7) del Rotavirus. La "l" a T=13l es refereix a la quiralitat (levogira o esquerrana) de l'arranjament.
Aquestes simetries permeten la formació de closques proteiques tancades i estables amb el mínim d'informació genètica.
Llavors, la meva descripció de la replicació era incorrecta? +
La teva descripció de l'estructura general, el genoma, i les funcions de VP1/VP3 era majoritàriament precisa. No obstant això, el mecanisme detallat de com es forma el nou genoma dsRNA durant la replicació difereix del que vas descriure.
El punt clau de diferència és que la síntesi de la cadena negativa (-) per formar el dsRNA no ocorre per "internalització" i "re-associació" directa al citoplasma obert. En canvi, té lloc de manera concertada amb l'assemblatge: els ARNm (+) són empaquetats primer en partícules de nucli naixents dins dels viroplasmes, i és *dins* d'aquestes estructures protectores on la VP1 sintetitza la cadena (-) complementària utilitzant l'ARNm (+) com a motlle.
Què són els viroplasmes? +
Els viroplasmes són inclusions o "fàbriques" virals que es formen al citoplasma de les cèl·lules infectades per Rotavirus (i altres Reoviridae). No estan envoltats de membrana. Són llocs dinàmics on s'acumulen proteïnes virals (especialment les no estructurals com NSP2 i NSP5) i els ARNm virals.
Actuen com a centres d'organització per a la replicació del genoma viral (la síntesi de dsRNA a partir de motlles d'ARNm) i l'assemblatge de les partícules de nucli (cores) del virus. Concentrar aquests components augmenta l'eficiència de la replicació i protegeix els intermedis virals del sistema immunitari innat de la cèl·lula.
Per què és tan important l'encaputxament (capping) de l'ARNm per VP3? +
L'addició de la caputxa 5' (una molècula de 7-metilguanosina unida de manera inusual) als ARNm per part de VP3 és vital per diverses raons:
- Estabilitat: Protegeix l'extrem 5' de l'ARNm de la degradació per exonucleases cel·lulars.
- Exportació: Facilita el transport dels ARNm des de la partícula viral (DLP) cap al citoplasma.
- Traducció: És essencial perquè els ribosomes cel·lulars reconeguin i s'uneixin a l'ARNm per iniciar la síntesi de proteïnes. Sense la caputxa, la traducció seria molt ineficient o inexistent.
- Evasió Immunitària: Modificar l'ARNm viral perquè s'assembli als ARNm cel·lulars pot ajudar a evitar el reconeixement per sensors d'ARN del sistema immunitari innat.
És una estratègia clau que permet al virus utilitzar la maquinària de traducció de la cèl·lula hoste de manera eficient.
Referències
- Genus: Rotavirus - ICTV
- Rotavirus ~ ViralZone - Expasy
-
Rotavirus Replication Cycle - PMC (NCBI)
-
Rotavirus Genome Replication and Assembly - PMC (NCBI)
- Structural insights into rotavirus transcription - Nature Communications
-
Structure of the Rotavirus Inner Capsid Particle - PMC (NCBI)
Lectures Recomanades
Last updated April 22, 2025